FLORES
MORFOLOGÍA DEL DESARROLLO
El desarrollo del sistema circulatorio se inicia en la 3SD con la formación de la placa cardiogénica
y plexos vasculares en a) el mesodermo embrionario (hoja visceral), b) el mesodermo del saco
vitelino y c) el mesodermo del pedículo de fijación. En la 4SD, se inicia la circulación: se ha
formado el corazón tubular primitivo recto y el arco vascular sistémico-embrionario, y dos arcos
vasculares no-embrionarios (vitelino y umbilical). El embrión humano desarrolla un sistema
circulatorio eficiente hacia el final del PS.
Desarrollo temprano: de la placa cardiogénica al corazón tubular primitivo
Formación de la placa cardiogénica
Las células del epiblasto que formarán la placa cardiogénica se ubican (en el epiblasto)
lateralmente a la región cefálica de la línea primitiva y caudalmente al organizador primario. Al
ingresar -en la gastrulación- a través del surco primitivo, migran en sentido cefálico. Las células
que abandonan el epiblasto tempranamente forman las regiones cefálicas del corazón y las que
lo hacen tardíamente forman las regiones caudales.
El origen de las células que forman la placa cardiogénica: La posición de las células, a lo largo del
eje céfalo-caudal, cuando se invaginan en el surco primitivo se relaciona con su futura ubicación
en la placa cardiogénica y con la región del corazón que originarán. Las células que se invaginan
medialmente, en el extremo del surco primitivo (adyacentes al nodo), forman la notocorda y,

adyacentes a ellas, las células que formarán zonas mediales del endodermo. Las células ubicadas
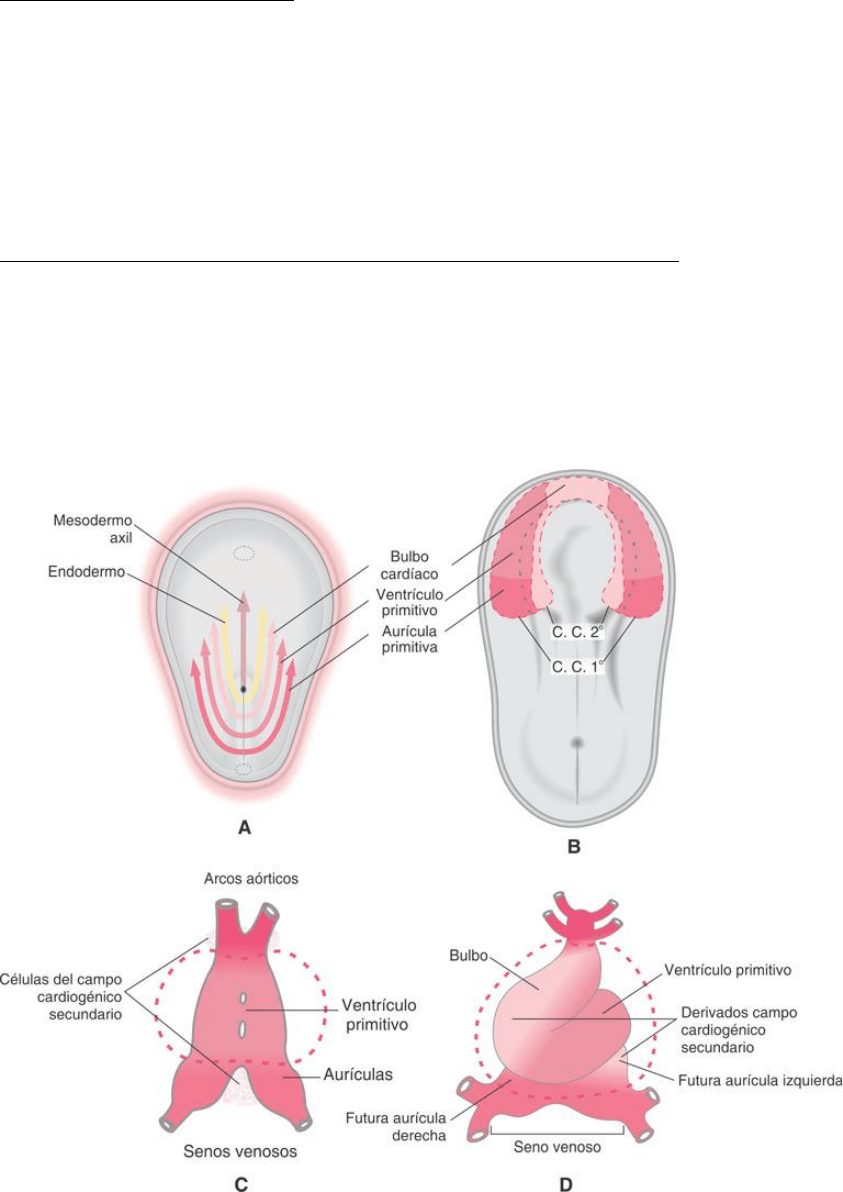
cefálicamente en el surco primitivo originarán la parte medial y cefálica de la placa cardiogénica;
esta región originará el bulbo cardíaco (ventrículo derecho, cono y tronco de salida de los
ventrículos y, probablemente, también la aurícula izquierda). Un poco más caudalmente se
ubican las células que formarán el ventrículo primitivo (originará el ventrículo izquierdo) y, a
continuación, las que formarán aurículas (aurícula derecha) y, probablemente, senos venosos.
Sin embargo, las subpoblaciones epiblásticas no están determinadas a formar las distintas
regiones mencionadas, por que la especificación ocurre más tarde, produciéndose de manera
distinta: las células ventriculares se especifican antes que las auriculares.
Ya pregastrularmente existirían células determinadas. Los distintos fenómenos de las células son
a) por un lado, una determinación genérica en sentido cardiogénico, b) una especificación que
alude a la definición de regiones y c) una especificación en el nivel tisular o histogenético.
La determinación de la placa o campo cardiogénico. Comportamientos celulares y moleculares
involucrados: El campo cardiogénico se constituye con células provenientes del epiblasto que
durante la gastrulación forman el mesodermo lateral. Estas células migran cranealmente,
convergen por delante de la placa precordal y forman la región semilunar denominada placa
cardiogénica. En sentido estricto, es la hoja esplácnica resultante de la deslaminación de esa
zona del mesodermo lateral la que debe recibir el nombre de campo cardiogénico. La hoja
somática de dicha región no participa en el desarrollo cardíaco.
Las células del campo cardiogénico están determinadas a formar sólo algunos tipos celulares del
corazón definitivo. Las restantes células cardíacas son de origen extracampo cardiogénico, como
las provenientes de la población proepicárdica y de la cresta neural cardiogénica, y dependen
de fenómenos de determinación diferentes.
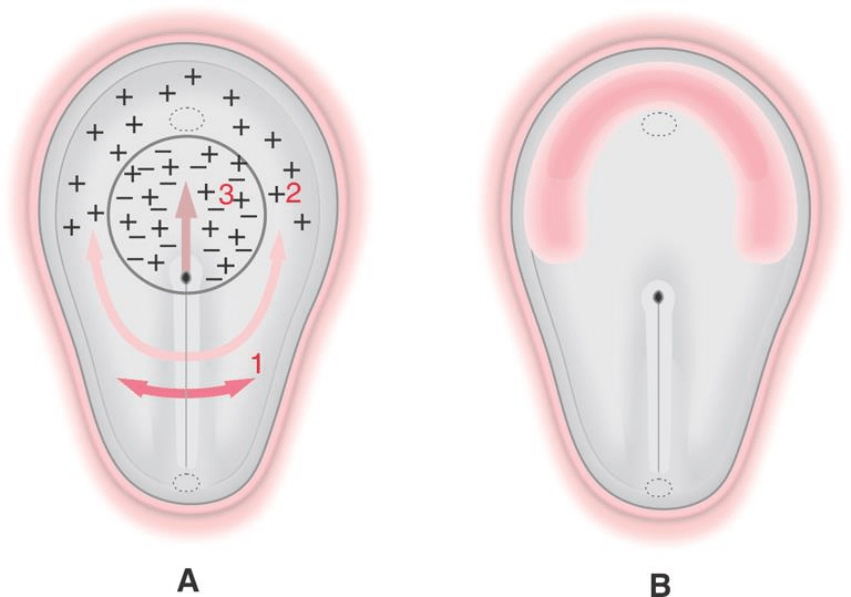
Las señales positivas (cardiogénicas) provienen fundamentalmente del endodermo e incluyen
a la proteína morfogenética ósea 2 (BMP-2), el factor de crecimiento fibroblástico 8 (FGF-8) y

las proteínas Crescent y Cerberus, que son proteínas inhibitorias de la acción de las proteínas
Wnt actuando sobre sus receptores. El ectodermo epidérmico también es fuente de BMP.
Las señales negativas (anticardiogénicas) provienen fundamentalmente de a) el tubo neural,
fuente de las proteínas Wnt3a y Wnt8 que promueven la formación de vasos sanguíneos e
inhiben la del corazón y de b) el mesodermo axil cordal que secreta las proteínas señal Nogina
y Cordina que inhiben a la señal BMP procedentes del endodermo.
Las señales cardiogénicas se distribuyen en forma de gradiente láteromedial. La señal BMP es
originada tanto en el ectodermo como en el endodermo del intestino anterior (faríngeo). Éste
también secreta Fgf8 e inhibidores de Wnt.
El papel de las señales positivas es estimular la cardiogénesis en el mesodermo esplácnico de la
región cefálica y el papel de las señales negativas es delimitar la extensión del campo y definir
el área apropiada.
Las proteínas Bmp inducen la expresión de Fgf-8 en el endodermo y éste participa estimulando
la expresión de proteínas que participan en la programación de la evolución en sentido
cardíaco.
La determinación progresiva de las células cardiogénicas: la placa cardiogénica, los campos
cardiogénicos primario y secundario y otras estirpes celulares: El CTP recto representa sólo a la
región denominada ventrículo primitivo que origina al ventrículo izquierdo definitivo. La región
denominada a) tracto de entrada, que comprende los conductos auriculoventricular, auricular
y sinusal (caudal al ventrículo primitivo) y la región denominada b) tracto de salida, que
comprende el bulbo cardíaco (cefálico al ventrículo primitivo) se agregan secundariamente al
CTP recto durante la torsión cardíaca.
El tracto de entrada al CTP recto se agrega a éste antes que el tracto de salida o bulbo cardíaco.
Las regiones que se agregan tardíamente al CTP recto, y que provocan su torsión, se generan en
el campo cardiogénico secundario. Las restantes células de la placa cardiogénica -que no son
campo cardiogénico secundario- constituyen un campo cardiogénico primario. Las porciones de
entrada al CTP recto (aurícula primitiva y senos venosos) se forman y agregan a él a partir de la
porción caudal, bilateral, de la placa cardiogénica.
a) El proceso de especificación más temprano ocurre pregastrularmente: la aparición de células
genéricamente procardiogénicas en el epiblasto. Esta población tempranamente se segrega en
dos subpoblaciones: una endocardiogénica y otra miocardiocitogénica. Este fenómeno implica
una especificación de tipos tisulares, pero no instala una especificación regional. Este segundo
aspecto empezaría a instalarse durante la gastrulación, dependiendo de la posición que ocupan

las células migrantes a lo largo del eje céfalo-caudal del surco primitivo. Sin embargo, tampoco
este fenómeno implica un proceso de especificación sino más bien de relación probabilística
entre posición inicial en el surco primitivo y posición final en la placa cardiogénica.
b) La segunda etapa es la especificación y patterning de la placa cardiogénica. Se trata de un
conjunto de procesos de señalización espacialmente estructurados mediado por la distribución
de señales cardiogénicas y anticardiogénicas en el que participan varios centros señalizadores,
varias proteínas señal, sus respectivos receptores e inhibidores. La especificación de regiones en
la placa cardiogénica se produce en sentido céfalo-caudal: primero la región del ventrículo
primitivo y luego aurícula primitiva. También existe un modelo que propone que la parte final o
senos venosos no sufren un proceso de especificación de tipo cardiogénico. Lo descrito hasta
aquí corresponde al campo cardiogénico primario de la placa cardiogénica.
c) Poco después se produce la determinación de las células del campo cardiogénico secundario.
A medida que estas células se incorporan al CTP recto se determinarían en bulbo, cono y tronco
arterioso. La determinación temprana de las células del campo secundario parece ser similar a
la determinación de las del campo primario. Sin embargo, durante su incorporación al CTP recto,
como tracto de salida de este último, sufren una reprogramación adicional que probablemente
esté relacionada con su determinación y diferenciación en bulbo cardíaco
d) Poco más tarde, mientras se van formando los arcos aórticos y sus correspondientes arcos
branquiales, el mesénquima regional es invadido también por células provenientes de los 3 o 4
últimos segmentos de la cresta neural vagal. Estas células migran siguiendo el trayecto de los
arcos aórticos, llegan al saco aórtico e invaden, desde el extremo cefálico al caudal, las paredes
del tronco y cono, llegando profundamente hasta la región de los conductos
auriculoventriculares. Las células de la región de cresta neural mencionada, denominada por
dicho motivo cresta neural cardiogénica, participan aportando tejidos conectivo y muscular liso
a los derivados del tronco-cono (porción proximal de grandes vasos).
e) Finalmente, las células que forman el pericardio visceral o epicardio, el tejido conectivo
perivascular de los vasos coronarios y, probablemente, también su musculatura lisa vascular
provienen de una población celular que ingresa en el corazón a través de su polo caudal. Estas
células tienen su origen en una región diferenciada de mesénquima, denominada población
proepicárdica, que rodea a los senos venosos y la superficie del septum transversum.
El origen múltiple de las poblaciones celulares que intervienen en la cardiogénesis: El desarrollo
del corazón requiere la participación varios tipos celulares de distinto origen embrionario que
confluyen y se integran en la elaboración de los tejidos cardíacos y varias poblaciones celulares
embrionarias precursoras de células y tejidos cardíacos aportan también células que participan
en el desarrollo de otros órganos.
Entre las varias poblaciones que participan en el desarrollo del corazón están las siguientes:
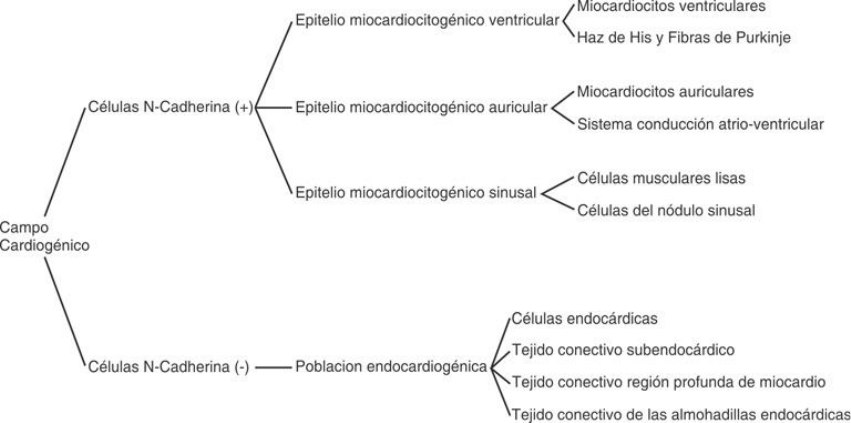
1) Las células epiblásticas que forman la placa o campo cardiogénico. Estas células tienen
la capacidad de formar en principio dos subpoblaciones:
a. endocardiogénica o N-cadherina (-). Originan las células endocárdicas de todo
el corazón, el tejido conectivo subendocárdico y el tejido conectivo de la porción
profunda del miocardio.
b. miocardiocitogénica o N-cadherina (+). Originan los miocardiocitos auriculares
y ventriculares y las células del sistema de conducción auriculoventricular, el haz
de His y las fibras de Purkinje de los ventrículos.
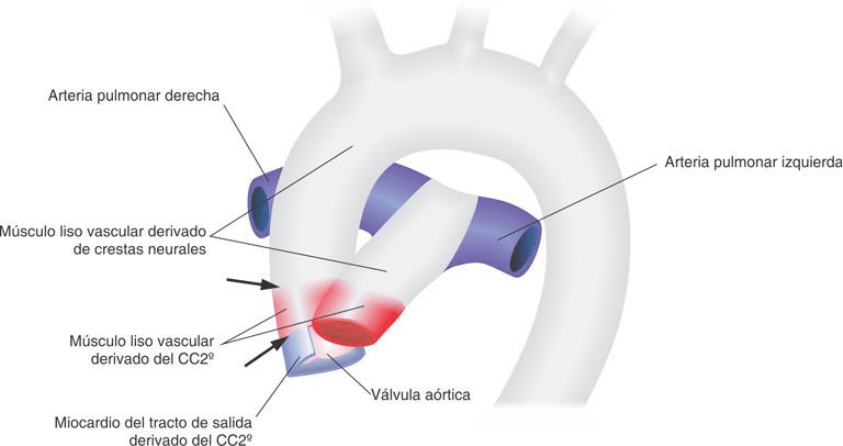
2) A estas células se les agregan luego las que se segregaron como campo cardiogénico
secundario que forman algunos de los tipos celulares en el ventrículo derecho y el cono
y, además, células musculares lisas vasculares de los infundíbulos y porciones
proximales de las arterias aorta y pulmonar. El campo cardiogénico secundario es una
adquisición filogenética reciente, está asociado a la evolución del circuito pulmonar en
relación con los cambios evolutivos sufridos en la transición de la forma de vida acuática
a la terrestre. Se considera que también forman parte del campo cardiogénico
secundario las células del mesoesófago ventral en la que se desarrolla la vasculatura
pulmonar, que se continúan anatómicamente con el corazón y que se incorporan al
mismo formando la mayor parte de la pared de la aurícula izquierda. Así, el campo
cardiogénico secundario se ubica durante el período somítico temprano a lo largo del
mesocardio dorsal y tiene dos regiones importantes:
a. el área superior o cefálica o del tracto de salida origina al bulbo cardíaco del
que luego derivan el tracto de salida del corazón y el ventrículo derecho, y
b. el área inferior o caudal o del tracto de entrada y pulmonar, asociada al esbozo
pulmonar, originaría parte importante de la aurícula izquierda. El área caudal
del campo cardiogénico secundario incluye también la población celular
proepicárdica asociada al seno venoso ubicado en el septum transversum.
3) Una tercera población celular proviene de la cresta neural cardiogénica. Esta cresta está
compuesta por los tres primeros segmentos occipitales que se encuentran incluidos en
la cresta vagal. Las células de la cresta neural cardiogénica migran ventralmente y,
siguiendo el trayecto de los arcos aórticos 3º, 4º y 6º ingresan en el tronco-cono del
corazón, migran a través de él por debajo del subendocardio y se introducen
profundamente en el corazón. Aportan células que forman transitoriamente parte de
las crestas troncoconales y llegan hasta la porción membranosa del tabique
interventricular. Estas células acompañan la migración de las fibras vagales que
ingresan en el corazón y, además, forman algunas de las neuronas parasimpáticas del
corazón. En la región ascendente de las grandes arterias, aorta y pulmonar, estas células
se diferencian en células musculares lisas vasculares de la túnica media
4) La población celular proepicárdica es una población de células mesenquimáticas
aplanadas que forman parte del mesotelio, el septum transversum, en el polo venoso
del corazón. Estas células invaden la superficie del corazón a modo de una monocapa
de células planas y forman el revestimiento epicárdico del corazón. Junto con estas
células ingresan también células endoteliales que forman el revestimiento endotelial de
los vasos coronarios y el tejido conectivo perivascular. Muchas de estas células se
transforman en las células musculares lisas de los vasos coronarios, fibroblastos
perivasculares o miofibroblastos. Además aportan una parte importante de
mesénquima que luego se diferencia en el tejido conectivo de la mayor parte del
miocardio. Numerosas células que cumplen una función similar a éstas ingresantambién
en el corazón a partir del mesénquima que rodea el polo arterial del corazón.
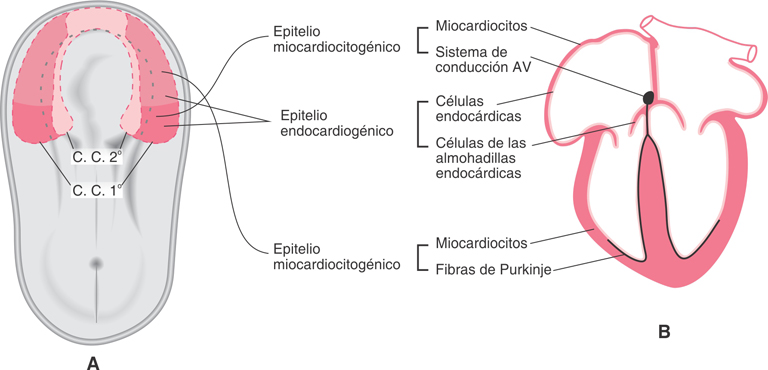
El área cefálica del campo cardiogénico secundario y sus derivados anatómicos e histológicos: La
placa cardiogénica posee una porción amplia (campo cardiogénico primario), y una porción más
pequeña, de ubicación medial (campo cardiogénico secundario). El campo primario origina el
ventrículo primitivo (ventrículo izquierdo), el canal auriculoventricular, la aurícula primitiva
(forma parte de las aurículas derecha e izquierda) y los senos venosos (parte de la aurícula
derecha). El campo cardiogénico secundario posee dos regiones: una superior o área cefálica y
una inferior o área caudal. Algunos autores incluyen en esta última la población celular
proepicárdica. El bulbo cardíaco del corazón tubular primitivo (CTP), incluyendo sus tres
porciones (ventrículo derecho, los conos de salida de los ventrículos y el tronco arterioso), deriva
del área cefálica del campo cardiogénico secundario. Durante la formación del CTP recto las
células del campo secundario de la placa cardiogénica se distribuyen a lo largo de la zona media
del piso de la faringe desde el 1º al 2º arco branquial (hasta la región caudal del 2º arco), un
poco por detrás del extremo cefálico (tronco de salida) del CTP. Desde esta posición se
incorporan luego al CTP durante el fenómeno denominado torsión en “C”.
En la primera fase de la torsión cardíaca o formación del asa cardíaca (torsión en “C”), las células
del campo cardiogénico secundario, que formarán el bulbo, se despegan del mesodermo ventral
de la faringe y se agregan al extremo cefálico del CTP o ventrículo primitivo. El bulbo ingresa así
en el celoma pericárdico y desvía la unión bulboventricular hacia la derecha y adelante
formando el asa bulboventricular que constituye precisamente el fenómeno denominado
“torsión en “C”. La segunda fase de la torsión, o torsión en “S”, ocurre más tarde, cuando al
extremo caudal del ventrículo primitivo se agrega la región auricular izquierda. Ésta ingresa en
el celoma pericárdico desplazando hacia la izquierda, hacia arriba y hacia el dorso la zona de
unión auriculoventricular. La formación de la torsión en “S” conduce a la formación de otros dos
surcos en el asa cardíaca: el surco ventriculoauricular, entre el ventrículo y la futura aurícula
derecha, y el surco auriculosinusal, entre la aurícula izquierda y el seno venoso izquierdo. Más
tarde, toda la región auricular asciende y se ubican dorsalmente a los ventrículos. Con dichos
cambios concluye la torsión del corazón tubular primitivo.
La formación del tracto de salida del corazón implica el agregado, en forma sucesiva, de las
regiones del bulbo cardíaco, el cono y el tronco al extremo cefálico del CTP. Estas regiones se
agregan al CTP antes de la llegada de una oleada de células migrantes provenientes de la cresta
neural cardiogénica que también ingresan en el corazón a través de su extremo cefálico y
participan de la histogénesis cardíaca y de los grandes vasos (aorta y pulmonar). En la especie
humana, la zona en la que las paredes ventriculares se continúan con las arterias aorta y
pulmonar constituye una zona de mezcla de poblaciones celulares diferentes que,
integradamente, se encargan de la histogénesis de dicha zona de transición. La musculatura
cardíaca del tracto de salida de los ventrículos es diferente de la del resto del miocardio. Ello se
debería a su diferente origen embrionario. Las células del campo cardiogénico secundario tienen
capacidad de diferenciarse en miocardiocitos en la región del ventrículo derecho. Sin embargo,
en la región del cono y parte proximal del tronco arterioso también exhiben capacidad para
diferenciarse en células musculares lisas similares a las de las capas medias de las arterias. Allí
participan formando la musculatura de las regiones proximales, de salida, de las arterias
pulmonar y aorta. Las células musculares lisas de las porciones más distales de estos mismos
vasos tienen un origen diferente; resultan de la diferenciación en células musculares lisas
vasculares de las células de la cresta neural cardiogénica.
Una zona estrecha de mesodermo que circunda al campo cardiogénico secundario, el
mesodermo parafaríngeo contribuiría con células a la región de transición miocárdico-arterial
de nacimiento de los grandes vasos.
Las células de la cresta neural y de la población celular proepicárdica (pcPE) en el desarrollo del
corazón. Su contribución al desarrollo de la vasculatura coronaria: Luego que se ha formado el
CTP se inicia su torsión. Durante este proceso, células extracardíacas ingresan en él y participan
de la morfogénesis y, sobre todo, de la histogénesis cardíaca. Las células extracardíacas tiene
dos orígenes principales: la cresta neural cardiogénica (segmentos cardiogénicos de la cresta
neural vagal) y la población celular proepicárdica (pcPE). Estas células provienen de la serosa
que cubre el septum transversum y el seno venoso.
Las células de la cresta neural (CN), migran hacia el esbozo cardíaco en etapas más tempranas
de su desarrollo a través del mesénquima de los arcos branquiales en dirección hacia el
mesocardio dorsal y luego ingresan a través del mesénquima que rodea a los arcos aórticos.
Estas células provienen de la CN craneal y troncal, correspondiente a los niveles segmentarios 1
a 3, superponiéndose con la CN vagal. Esta región de la cresta neural es denominada “cresta
neural cardiogénica” no porque migren exclusivamente al corazón, sino porque muchas de ellas
se incorporan al corazón y son necesarias para su desarrollo. Las células de la CN cardiogénica
también se incorporan al endotelio de los arcos aórticos y el tabique aorticopulmonar.
Las células del epitelio miocardiocitogénico del CTP segregarían factores quimiotácticos para la
pcPE. Ello les permite invadir la superficie del corazón formando el epicardio. Entre el epicardio
y el epitelio miocardiocitogénico existe un espacio delgado a lo largo del cual migran: células de
la cresta neural, células endoteliales provenientes del esbozo hepático o senos venosos y otras
no identificadas.
Luego que la pcPE cubre, como una monocapa confluente, la superficie “epicárdica” del corazón,
algunas de sus células sufren una T e-m y pasan al espacio subepicárdico. Estas células son
genéricamente denominadas como células derivadas del epicardio o Epdc. Las Epdc, junto a
otras células provenientes de la pcPE, invaden la pared muscular cardíaca, las almohadillas
endocárdicas y el subendocardio. La T e-m de las Epdc está precedida por Gata y Fog-2 en los
miocardiocitos y Ets1 y 2 en las Epdc y las células provenientes de la pcPE.
Las células endoteliales de los vasos coronarios derivan de células que ingresan con la pcPE.
Inicialmente, los vasos coronarios primitivos se hallan comunicados sólo con el seno venoso y,
por lo tanto, el flujo sanguíneo depende de éste. Más tarde se establece la comunicación con la
aorta y el sentido de la circulación se invierte y acelera. La demanda de oxígeno miocárdica, por
medio de factores inducibles por hipoxia (Hif-1α), y el factor de crecimiento vascular endotelial

(Vegf) regulan estos procesos. Una de las últimas oleadas, en profundidad, de las células de la
pcPE ocurre en la zona de la unión atrioventricular y se relaciona con la formación de los orificios
arteriales en los senos de Valsalva. Las células epicárdicas que invaden esta zona generan la
musculatura lisa de las arterias coronarias y fibroblastos adventiciales de dicha región.
El espacio subepicárdico es utilizado en el polo venoso para la migración de células endoteliales
de la microvasculatura del esbozo hepático y del seno venoso. Estas células luego invaden el
miocardio y originan fibroblastos intersticiales, plexos vasculares entre los cardiomiocitos, y las
últimas establecen la comunicación con las arterias. Células derivadas del epicardio también
invaden las almohadillas endocárdicas, se diferencian en fibroblastos y participan de la
formación de la trama fibrosa que forma esqueleto de válvulas y valvas.
Formación de los tubos endocárdicos
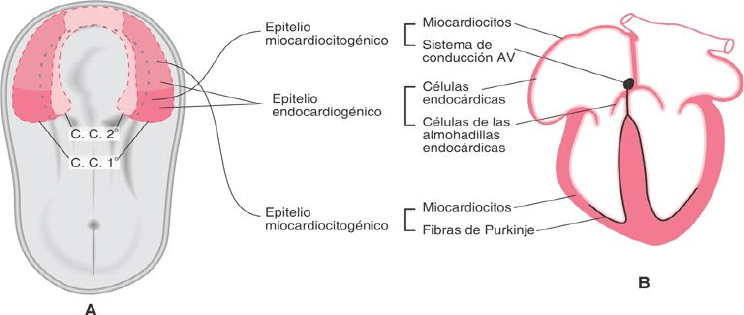
La cardiogénesis se inicia con la formación de dos poblaciones en la placa cardiogénica: una
población endocardiogénica, adyacente al endodermo, y un epitelio miocardiocitogénico,
bordeando el celoma. La endocardiogénica genera cúmulos celulares epitelioides macizos que
luego se cavilan y se llenan de líquido, el plasma sanguíneo primitivo. Estos espacios se fusionan
y forman plexos que al confluir forman los tubos endocárdicos, a ambos lados de la línea media.
El epitelio miocardiocitogénico, precursor de miocardiocitos, se ubica recubriendo los tubos
endocárdicos. Entre ambos tejidos se desarrolla rápidamente una matriz extracelular abundante
y densa, la gelatina cardíaca, separada de ambos por una membrana basal.
Formación del corazón tubular primitivo
Antes del plegamiento del embrión, los tubos endocárdicos bordean lateralmente la placa
precordal. Sus extremos cefálicos se unen en la línea media y los caudales se ubican
lateralmente. Durante el plegamiento, el extremo cefálico del tubo neural y la membrana
bucofaríngea se ubican cefálica y dorsalmente a la placa cardiogénica y el corazón, en formación,
pasa a ocupar la región ventral. El septum transversum se ubica entonces entre la cavidad
pericárdica y el saco vitelino. Luego del plegamiento, el corazón tubular primitivo (CTP) se ubica:
1) en la superficie ventral del embrión,
2) caudalmente a la prominencia frontal, al estomodeo y a la membrana bucofaríngea,
3) en el interior del celoma de la prominencia cardíaca,
4) ventralmente al intestino anterior y
5) cefálicamente al septum transversum.
Durante el plegamiento, los tubos endocárdicos se aproximan a la línea media y se fusionan,
iniciando en los extremos cefálicos y progresando hacia caudal. Se forma así un CTP recto único,
medial, con simetría bilateral que pasa a ocupar las regiones antes mencionadas. El CTP recto
está formado por la región ventricular del campo cardiogénico primario, al cual se le agrega a
continuación regiones adicionales: el bulbo cardíaco (del campo cardiogénico secundario) en su
extremo cefálico y la región auricular en su zona caudal. Como consecuencia, se inicia la torsión
del corazón. Durante el plegamiento, el polo arterial (extremo cefálico) del corazón se continúa
mediante el primer par de arcos aórticos con las aortas dorsales en tanto que el polo venoso
(extremo caudal) se continúa con cavidades venosas ubicadas en el septum.
El CTP queda integrado por el endocardio, la gelatina cardíaca y el epitelio miocardiocitogénico,
organizados en un tubo único y medial. Durante la cardiogénesis, al CTP se agregan poblaciones
adicionales: células del campo cardíaco secundario (bulbo cardíaco y aurícula izquierda) que se
incorporan al CTP durante su torción y poblaciones extracardíacas provenientes de la CN y del
órgano proepicárdico (OPE). Éstas se incorporan al CTP luego de iniciada su torsión.

El CTP está unido a la pared ventral del intestino anterior por medio del mesocardio dorsal. A
principios de la 4SD (10 somitas), el mesocardio empieza a desintegrarse. A los 16 somitas
desaparece dejando una comunicación dorsal al corazón: el futuro seno transverso, entre
ambos lados de la cavidad pericárdica. En este momento, aparecen surco que delimitan las
futuras regiones del CTP: el bulbo cardíaco, el ventrículo primitivo, la aurícula primitiva y el seno
venoso.
Comunicación del corazón con los lechos vasculares arteriales y venosos
Los tubos endocárdicos se forman aisladamente de los vasos. El extremo cefálico del CTP pronto
se comunica con los primeros arcos aórticos que desembocan en las aortas dorsales. El extremo
caudal (seno venoso) se comunica con las venas cardinales comunes, las vitelinas y las
umbilicales, y se ubica en el mesénquima del septum.
Morfogénesis cardíaca
La torsión del CTP y formación del asa cardíaca
La torsión es el proceso por el cual el CTP se transforma en el asa cardíaca y se regionaliza en las
cuatro regiones primitivas (el bulbo cardíaco, el ventrículo primitivo, la aurícula primitiva y el
seno venoso). Éste lleva a la formación de un corazón con cuatro cavidades definitivas (dos
cámaras sistémicas: ventrículo izquierdo y aurícula derecha; dos cámaras pulmonares:
ventrículo derecho y aurícula izquierda) posicionadas diferentemente de las primitivas. Al
principio, el CTP es medial y simétrico y representa el corazón tubular sistémico de especies no
pulmonadas. La simetría bilateral se pierde debido a que al CTP sistémico, formado en su mayor
parte por el ventrículo primitivo, se agregan a su extremo cefálico y caudal porciones adicionales
correspondientes a las futuras cámaras del circuito pulmonar. Estas se originan a partir del
campo cardiogénico secundario que aporta células a la formación del bulbo cardíaco y la aurícula
izquierda. Durante la torsión, el corazón crece y se remodela.
La torsión cardíaca se describe en dos fases: torsión en “C” y torsión en “S”. La torsión se inicia
con el ingreso en la cavidad pericárdica del bulbo cardíaco (porción superior del campo
cardiogénico secundario). Al introducirse en el celoma, el bulbo cardíaco se ubica ventralmente
y a la derecha del ventrículo primitivo, y juntos forman un asa bulboventricular de concavidad
izquierda, que se profundiza y forma el surco bulboventricular, que marca la posición del futuro
anillo interventricular, el cual delimita el borde del septum interventricular que se ubica entre
el bulbo cardíaco (futuro VD) y el ventrículo primitivo (futuro VI). Finalizada la torsión en “C”, el
anillo I-V delimita un orificio transitorio que comunica VD (pulmonar) con VI (sistémico). Muchas
de las células del anillo I-V formarán parte del sistema de conducción ventricular.
Debido a la torción en “C”, el extremo caudal del ventrículo primitivo se desplaza hacia la
izquierda. La aurícula primitiva medial se adapta a este desplazamiento, cambia de forma, y la
zona de comunicación A-V (anillo primario A-V) se desplaza hacia la izquierda. Se forma así un
surco auriculoventricular, de concavidad derecha, entre el ventrículo primitivo y la aurícula
primitiva. Simultáneamente, debido al desplazamiento del anillo primario A-V hacia la izquierda
se forma un surco auriculosinusal entre la aurícula primitiva y la porción izquierda del seno
venoso. Formados estos tres surcos, el corazón adquiere forma de “S”. La incorporación a la
aurícula primitiva (futura AD), de células del campo cardiogénico secundario formarán la AI.
Parte de la cara dorsal de la aurícula primitiva se mantiene en contacto con el mesoesófago
ventral en cuya intimidad se forma el esbozo pulmonar. Este mesodermo, que en adulto forma
parte del tejido conectivo del mediastino, es denominado meso mediastinal. Un hecho que
contribuye a la deformación de la aurícula primitiva y a la torsión en “S” del corazón es que a
partir del campo cardiogénico secundario se incorporan células que pasan a ocupar la porción
izquierda de la aurícula, interponiéndose entre la aurícula primitiva sistémica y el ventrículo
primitivo sistémico. Por esto, la aurícula primitiva y el ventrículo primitivo (ambos sistémicos)
pierden su comunicación inicial; la aurícula primitiva sistémica queda como aurícula derecha
que se comunica con la aurícula izquierda (pulmonar) y esta, a su vez, se comunica, por medio
del anillo primario A-V, totalmente desviado a la izquierda, con el ventrículo izquierdo sistémico.
La formación de cavidades definitivas
Durante la torsión en “S”, las aurículas D e I crecen, se expanden dorsalmente y, el mesoesófago
ventral -que queda entre ellas- genera la espina dorsal atrial (de ubicación medial) que se separa
parcialmente las regiones auriculares. La espina queda alineada respecto del anillo I-V que
enmarcará el crecimiento del tabique inferior. Tanto la espina como el anillo tienen función en
el tabicamiento cardíaco.
Finalizada la torsión, crecimientos diferenciales adicionales llevan a los ventrículos a ubicarse
ventral y caudalmente respecto de las aurículas. El mayor crecimiento de las cavidades
izquierdas hace que el anillo primario A -V sufra un desplazamiento aparente hacia la derecha.
De esta forma, el conducto AV también queda alineado con la espina dorsal atrial y con el “anillo
I-V”. Durante el crecimiento diferencial, las aurículas crecen más que el septum transversum e
ingresan en la cavidad pericárdica, excepto la pared dorsal de la AI (derivada del CCS) a través
de dicha región (mesocardio/mesomediastino) ingresan en el corazón las venas pulmonares.
Los senos venosos acompañan el cambio de posición de las aurículas y pasan a ubicarse
dorsalmente a ellas. Ambos senos se fusionan y el surco aurículo-sinusal izquierdo se profundiza,
por lo que el seno pierde su comunicación con la aurícula izquierda, y termina desembocando
en un único orificio sinoauricular, en la AD. Este desplazamiento hacia la derecha del orificio
sinoauricular es simultáneo con el desplazamiento relativo en la misma dirección del A-V.
Fusionados los senos venosos, se describen una porción medial o zona transversa y dos zonas
laterales o cuernos derecho e izquierdo. La zona transversal y el cuerno derecho son
incorporados como pared de AD y pasan al interior de la cavidad pericárdica. En el lado
izquierdo, el cuerno venoso y la vena cardinal común quedan fuera del celoma pericárdico y en
contacto con el septum transversum. Al final de la torsión, en el bulbo cardíaco se describe en
tres regiones: a) el futuro ventrículo derecho, lateral al ventrículo izquierdo, b) una porción
adelgazada que forma el cono de salida de ambos ventrículos y, cefálicamente, c) el tronco
arterioso. El tronco-cono forma el tracto de salida de ambos ventrículos - que aún se hayan
comunicado- y termina en un ensanchamiento, el saco aórtico, del cual parten los arcos aórticos.
Interior del corazón: el tabicamiento cardíaco
De la 5SD a la 7SD, las cavidades derechas e izquierdas del corazón se separan. El tabicamiento
depende de a) la formación de proliferaciones mesenquimáticas subendocárdicas localizadas en
sitios precisos del endocardio (conducto AV y tronco-cono), b) el crecimiento diferencial de
algunas regiones respecto de otras de modo que algunas zonas queden estrechas (como
tabiques) mientras otras se ensanchan formando cavidades. Estos factores están influidos por
c) el régimen de la circulación intracardiaca y d) la incorporación al corazón, de poblaciones
celulares extracardíacas.
Una condición esencial para el correcto tabicamiento cardiaco es la alineación de estructuras a
partir de las cuales crecen poblaciones celulares que separan a las cavidades. Estas estructuras
son: el anillo I-V, el anillo primario A-V, la espina dorsal atrial y el tronco-cono.
Tabicamiento del conducto AV y formación de válvulas A-V
Simultáneamente con el tabicamiento I-A, en el anillo primario A-V se forman dos prominencias
mesenquimáticas subendocárdicas, las almohadillas endocárdicas principales. Estás se hallan
enfrentadas (dorsocaudal y ventrocefálica) en el conducto AV, crecen una hacia la otra,
contactan, se fusionan y dividen el conducto AV en uno derecho y otro izquierdo. El conducto
AV está entre la AI y el VI. En la fusión de las almohadillas AV, la región se remodela, el conducto
AV se desplaza a la derecha y comunica también la AD con el VD (6-7SD).
Las almohadillas principales forman la porción membranosa del tabique I-V, la valva septal de la
válvula tricúspide y la valva anterior o aórtica de la válvula mitral. Adyacente a las almohadillas
principales se forman otras almohadillas laterales, más pequeñas, que formarán la valva
anterosuperior de la válvula tricúspide y la válvula posterior o mural de la mitral.
Durante el tabicamiento A-V, la mayor parte del miocardio del anillo A-V se integra a la aurícula
y se interrumpe la continuidad entre los miocardios auricular y ventricular (aislamiento eléctrico
entre aurículas y ventrículos, salvo en la zona donde se diferencia del sistema de conducción AV.
El tabicamiento interauricular (IA)
A partir de la 4SD, el orificio sinoauricular se desplaza a la derecha y desemboca en el dorso de
la región derecha de la aurícula común, mientras que el mesoesófago ventral se mantiene unido
por el lado derecho. El orificio sinoauricular queda bordeado por dos valvas venosas que en su
porción cefálica se unen a un pliegue: el septum spurium, que se extiende hasta el techo de la
aurícula. Las prolongaciones caudales de las valvas venosas se insertan en la espina dorsal atrial.
La espina se extiende hasta la almohadilla endocárdica A-V dorsocaudal bordeando, por la
derecha, el orificio de la vena pulmonar común.
Durante la 5SD y 6SD, en el techo de la aurícula común se forma una cresta endocárdica de
posición medial, el septum primum: a su derecha queda el orificio sinoauricular y a su izquierda
el pulmonar común. Este septum crece en dirección al canal A-V dividiendo la aurícula común
en derecha e izquierda. Entre el borde libre del septum primum y las almohadillas endocárdicas
persiste transitoriamente un orificio, el ostium primum. A mediados de la 6SD, el ostium primum
se oblitera por proliferación de las almohadillas endocárdicas A-V y de la espina dorsal atrial que
forma la parte dorsal del septum primum. Antes del cierre del ostium primum, en la región
cefálica del septum primum se forma, por apoptosis, otro orificio: el ostium secundum. Este
orificio comunica durante toda la gestación las aurículas permitiendo que la sangre del corazón
derecho pase al izquierdo y luego a la circulación sistémica, antes de que el circuito pulmonar
funcione plenamente.
Entre la 6SD y 7SD un segundo tabique, el septum secundum, crece desde el techo de la aurícula
derecha, entre la valva izquierda del orificio sinoauricular y el septum primum. Este tabique
crece en forma descendente hacia el piso de la aurícula derecha, futura desembocadura de la
VCI. El borde del tabique sobrepasa el ostium secundum del septum primum, pero no llega hasta
el piso de la aurícula. Queda así un orificio en el septum secundum, el foramen oval, superpuesto
a la porción inferior del septum primum derivada de la espina dorsal atrial. Esta porción del
septum primum, flexible y móvil, opera como válvula del foramen oval permitiendo el pasaje
de sangre de AD a AI hasta el momento del nacimiento.
El tabicamiento interventricular (I-V)
El tabicamiento I-V se inicia en la 5SD con la aparición del septum inferius a lo largo del surco
bulboventricular. Su desarrollo involucra a) un aumento de la proliferación en la zona donde se
forma el septo y b) aposición y compactación de cardiomiocitos en el extremo de crecimiento.
Crece en forma ascendente, pero se detiene antes de llegar a las almohadillas endocárdicas
dorsal y ventral fusionadas. Queda así un espacio superior entre ambos elementos: el foramen
interventricular, que comunica las cavidades ventriculares derecha e izquierda y el tracto de

salida. El septum inferius forma la porción muscular del tabique I-V. El foramen IV se cierra
durante el 3MD por la formación de un tabique, la porción membranosa, que tiene doble origen:
la porción dorsal deriva de las almohadillas endocárdicas A-V y su porción ventral de las crestas
que tabican el tronco-cono del bulbo cardíaco. Éstas crecen de arriba abajo y se fusionan con el
septum inferius. Al finalizar el tabicamiento I-V, el ventrículo primitivo pasa a ser VI definitivo y
comunica con la aorta. La parte inferior del bulbo cardíaco pasa a ser el VD definitivo y se
comunica con la arteria pulmonar. Así, el tabique tiene un triple origen: la porción muscular
deriva del septum inferius y la porción membranosa, de las almohadillas endocárdicas A-V y las
crestas tronco-conales.
El tabicamiento troncoconal
El proceso se basa en la formación de crestas enfrentadas que crecen una hacia la otra, se
encuentran, fusionan sus bordes y dividen la cavidad en dos: se inicia en el cono y continúa hacia
el tronco arterioso. Durante la 5SD, aparecen en el cono dos primeros engrosamientos
subendocárdicos, las crestas conales septal y parietal. La septal se ubica dorsalmente y a la
derecha del septum inferius, mientras que la parietal se ubica ventralmente y a la izquierda, en
la encrucijada donde se encuentra el tracto de salida, las AV derecha e izquierda y la
comunicación IV. Las crestas se van formando de abajo hacia arriba. Cuando los reborde conales
se fusionan, forman un septum que divide el cono en una porción ventral (el infundíbulo de la
arteria pulmonar (VD) y otra dorsal, el infundíbulo de la arteria aorta (VI). A partir de las crestas
parietal y septal y de otras crestas accesorias se forman válvulas semilunares. Distalmente a las
válvulas, queda el tronco arterioso.
Simultáneamente, en el tronco arterioso se forman las crestas troncales. Las cresta dorsal-
derecha crece en dirección caudal-ventral y hacia la izquierda. La ventral-izquierda crece dorsal
y caudalmente y hacia la derecha. Estas crestas forman el tabique aorticopulmonar y dividen el
tronco arterioso y el saco aórtico en la aorta ascendente y el tronco de la arteria pulmonar.
Las crestas conales se acercan y unen entre sí, de abajo hacia arriba hasta unirse, en la 8SD, con
el tabique aorticopulmonar que crece hacia abajo. Así, se forma un tabique troncoconal
continuo con disposición en espiral. Formado el tabique tronco-conal, su borde libre inferior se
une al borde libre superior del septum inferius completando la formación del tabique I-V
membranoso y separando definitivamente ambos ventrículos.
En la zona de unión entre cono y tronco arterioso, nacen las arterias pulmonar y aorta. Una vez
formados los tabiques conal y aorticopulmonar, en dicha zona aparecen, a cada lado del tabique
troncoconal, tres crestas accesorias, que formarán las valvas de las válvulas semilunares.
Modelación del patrón de distribución de los principales vasos arteriales y venosos
Desarrollo del sistema arterial
El sistema arterial se origina a partir de arterias longitudinales y arterias de disposición
trasversal. En la región cefálica las longitudinales son pares (aortas dorsales derecha e
izquierda): se unen caudalmente y se continúan con un único vaso medial, la aorta medial. Las
arterias transversales son los arcos aórticos, las arterias intersegmentarias, las arterias
esplácnicas ventrales y las arterias laterales.
Evolución de las aortas dorsales cefálicas y de los arcos aórticos
Las arterias del circuito sistémico.
Los arcos aórticos son arterias pares que se originan en el mesénquima branquial de los arcos
branquiales: rodean la faringe y se extienden desde el saco aórtico hasta las aortas dorsales.
Existen 6 pares de arcos (el 5° es rudimentario), numerados en el orden de aparición, desde el
extremo cefálico al caudal. Nunca se hallan todos presentes al mismo tiempo; los dos pares
cefálicos originan sus derivados (vasos de la boca y el oído medio) antes de que los pares 4° y 6°
se formen. Los arcos aórticos originan sus derivados y desaparecen como tales durante la 5SD y
6SD.
En el desarrollo del extremo cefálico del SNC, las aortas dorsales acompañan a la elongación del
neuroeje y sobrepasan el 1°par de arcos. Estas prolongaciones anteriores formarán más tarde la
porción distal de las arterias carótidas internas.
Mientras se forma el 3° par, parte del 1° involuciona y la que persiste origina la arteria maxilar.
En la formación del 4° par, parte del 2° involuciona y la que persiste origina la arteria estapédica
con sus divisiones supraorbital y maxilomandiublar. El 3° par genera, por brotación, las arterias
carótidas externas. Porciones remanentes de los arcos 1 y 2 contribuirán a la formación de estas.
El 4° par recibe parte importante del flujo que expulsa el corazón y crece en grosor. A finales del
PS, se forma el 6° par, que origina ramas que irrigan a los esbozos pulmonares. Hasta el final del
PS, los arcos poseen simetría bilateral.
Durante el tabicamiento cardíaco y luego de éste, la mayor parte de la sangre se dirige hacia el
4° y 6° arco izquierdo, que se desarrollan más que los derechos (y estos quedan como ramas de
los primeros). La aorta dorsal izquierda también crece más que la derecha.
Durante la 5SD, el tracto de salida (cono, tronco y saco aórtico) es dividido por el tabique
troncoconal espiralado en una región ventral y una dorsal. La sangre del ventrículo izquierdo
ingresa en la división dorsal del tronco-cono, sale por la región ventral lateral derecha del saco
aórtico y se dirige principalmente al 3° y 4° par de arcos. La división de este flujo en dos
corrientes (una derecha y otra izquierda, con un mayor caudal en la izquierda) hace que la
porción izquierda del saco aórtico y tronco-cono origine un vaso de gran volumen que da origen
a la porción ascendente de la aorta. La porción derecha del saco aórtico forma un vaso de
menor calibre, el tronco arterial braquiocefálico, que queda como rama de la aorta.
La sangre del 3°par, al llegar a las aortas dorsales, se dirige hacia el prosencéfalo y las copas
ópticas. Otra parte de la sangre de este par es llevada por sus brotes (las carótidas externas)
hacia tejidos cefálicos no neurales (extracreaneanos).
El 4° par izquierdo crece mucho y, junto con la aorta dorsal izquierda (hasta la 7°
intersegmentaria cervical), forma parte del cayado/arco aórtico. El 3° arco izquierdo (carótida
primitiva izquierda) queda como rama del cayado. El 4° par derecho queda como rama del
tronco braquiocefálico, crece poco en longitud y forma una pequeña porción próximal de la
arteria subclavia derecha.
Así, el segmento de aorta dorsal inter-3°-4° arco queda casi sin caudal sanguíneo e involuciona.
El segmento de aorta dorsal derecha caudal a la 7° arteria intersegmentaria también
involuciona.
Las arterias del circuito pulmonar
La sangre del ventrículo derecho ingresa en la división ventral del tracto de salida (tronco-cono)
que forma el tronco de la arteria pulmonar. La sangre luego sigue por el 6° par, que forma las
porciones proximales de las arterias pulmonares derecha e izquierda. Las porciones distales de
las arterias pulmonares se originan a partir de las ramas de los 6° arcos que se dirigen al esbozo
pulmonar. La mayor parte de la sangre del tronco de la arteria pulmonar se dirige al 6° arco
izquierdo que forma un vaso grueso que desemboca en la aorta dorsal izquierda. Una pequeña
parle del caudal se dirige, a través de la futura arteria pulmonar izquierda, hacia el esbozo
pulmonar. La porción proximal del 6° arco y su rama, forman la arteria pulmonar izquierda. La
porción distal del 6° arco izquierdo, que desemboca en la aorta, forma un vaso transitorio, el
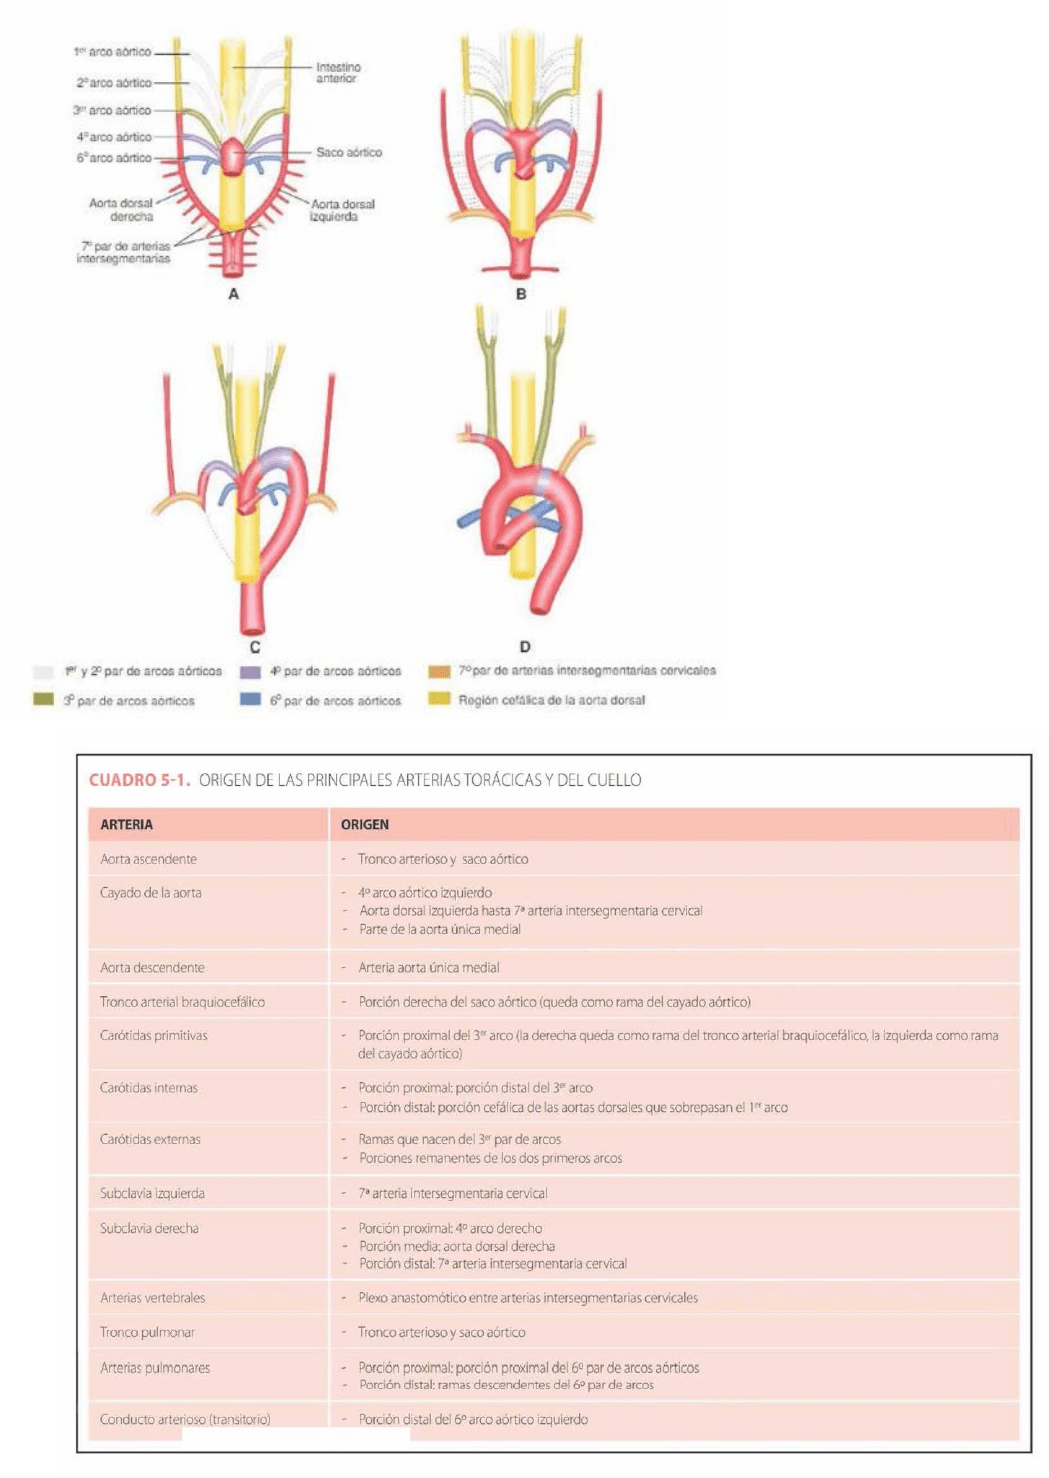
conducto arterioso de
Botal, que permanece
permeable hasta el
nacimiento. Esta arteria
transitoria constituye un
mecanismo de derivación
de sangre desde el circuito
pulmonar al sistémico
hasta tanto se habilite, en
el momento del
nacimiento, el sistema
vascular pulmonar. La
pequeña cantidad de
sangre que va por el 6°
arco derecho se dirige en
su totalidad por la rama
que va hacia el esbozo
pulmonar. La porción del
6° arco distal a dicha rama
no recibe sangre,
involuciona y desaparece.
Evolución de las arterias intersegmentarias y vasos vertebrobasilares
Las arterias intersegmentarias son ramas de las aortas dorsales y la aorta medial que irrigan a
los derivados somíticos de la pared corporal. Se ubican entre somitas y se distribuyen desde la
región occipital a la sacra, rodeando a los cuerpos vertebrales y dividiéndose en dos ramas: a)
dorsales que originan las arterias neurales y meníngeas, b) ventrales que originan las
intercostales. En la región occipital involucionan, y en la región cervical contribuyen a formar las
arterias vertebrales y subclavias.
La sangre del 4° par de arcos, a través de la 7° intersegmentaria, se dirige a los esbozos de
miembros superiores. La 7IS izquierda, por sí sola, forma la arteria subclavia izquierda y la
sangre de la aorta dorsal izquierda continúa su trayecto descendente a partir de ésta formando
la porción descendente de la aorta. Del lado derecho, el 4° arco aórtico se dirige, casi en su
totalidad, al esbozo de miembro. Debido a ello, la porción de aorta dorsal derecha entre la 7°
intersegmentaria y la aorta común (abdominal) involuciona y desaparece. La arteria subclavia
derecha tiene múltiple origen: a) su porción proximal deriva del 4° arco aórtico, b) su parte
media deriva del segmento de aorta dorsal entre el 4° arco aórtico y la 7° intersegmentaria y c)
su porción distal deriva de la 7° intersegmentaria.
Las primeras seis arterias intersegmentarias cervicales son transitorias: entre ellas forman un
plexo que termina en la 7° intersegmentaria. Este vaso longitudinal, que queda como rama de
la arteria subclavia, es la arteria vertebral. La porción de la 7° intersegmentaria distal al
nacimiento de la arteria vertebral queda como la arteria axilar.
Las arterias vertebrales se fusionan en la línea media, a la altura del postencéfalo, formando la
arteria basilar, la cual se bifurca bordeando al diencéfalo y, mediante la arteria comunicante
posterior, se anastomosa con la carótida interna homolateral. Se forma así el polígono de Willis.
Otras anastomosis longitudinales de las intersegmentarias cervicales, forman el tronco
tiroideocervical y las arterias cervicales profundas.
Las intersegmentarias torácicas y lumbares originan las arterias intercostales y lumbares. Las
intersegmentarias sacras originan las arterias ilíacas.
Las arterias umbilicales se originan en el mesénquima del pedículo de fijación y se conectan al
principio con la porción más caudal de las aortas dorsales. Las arterias ilíacas internas y externas
se originan como ramas de las intersegmentarias. Las umbilicales terminan siendo ramas de las
ilíacas internas. Luego del nacimiento, cada arteria umbilical está representada por la arteria
vesical superior de la ilíaca interna.
Evolución de las arterias esplácnicas ventrales y laterales
Las ramas esplácnicas ventrales en la región torácica del intestino anterior dan origen a las
arterias esofágicas y bronquiales. En la región abdominal forman tres arterias que corren en los
mesos hacia el tubo digestivo: a) en la región gastrohepática, el tronco celíaco, b) en la región
del asa vitelina, la arteria mesentérica superior, y c) en la región del intestino posterior, la
arteria mesentérica inferior.
Las ramas esplácnicas segmentarias laterales irrigan el mesodermo intermedio y forman las
arterias renales, suprarrenales y gonadales.
Desarrollo del sistema venoso
Evolución del sistema venoso sistémico
Las venas cardinales. Formación de la VCS y la VCI
Este documento contiene más páginas...
Descargar Completo
CIRCULATORIO.docx
 Estamos procesando este archivo...
 Lamentablemente la previsualización de este archivo no está disponible. De todas maneras puedes descargarlo y ver si te es útil.
Descargar
Estamos procesando este archivo...
Lamentablemente la previsualización de este archivo no está disponible. De todas maneras puedes descargarlo y ver si te es útil.